Resultados de la evaluación presentada en la edición 135, «Preparar la planta antes de que falte el agua».
Por: María Isabel López Líder de Estrategias Técnicas, Grupo SYS / Lizeth Johana Cardona RTC Antioquia Flores, Grupo SYS
Contexto climático y objeto de la evaluación
En la edición 135 de Metroflor Agro presentamos el protocolo de una evaluación diseñada para responder a una pregunta que El Niño 2026–2027 volvió urgente para la floricultura: cuánto puede reducirse la lámina de riego sin comprometer el crecimiento y la calidad exportable del crisantemo, y si la aplicación foliar preventiva de un bioestimulante desplaza ese umbral (López & Cardona, 2026). Este artículo presenta los resultados del ciclo de evaluación.
Desde entonces el evento se ha fortalecido. El 10 de septiembre, con el cuarto trimestre móvil consecutivo de condiciones El Niño en el océano y la atmósfera, el Ideam elevó a más del 90 % la probabilidad de un evento muy fuerte entre el último trimestre de 2026 y el primero de 2027, y al 75 % la probabilidad de que sea el más intenso de los últimos 76 años (Ideam, 2026). El máximo previsto coincide con la siembra y el desarrollo del ciclo destinado a San Valentín, de modo que la lámina de riego pasa de variable de manejo a restricción operativa.
Fundamento: déficit hídrico y bioestimulación preventiva
La disminución del potencial hídrico del suelo induce el cierre estomático parcial, que reduce la transpiración pero limita también la difusión de CO₂ hacia el mesófilo y la asimilación neta; si el déficit se sostiene, siguen la pérdida de turgencia y la reducción de la expansión celular (Chaves et al., 2003; Farooq et al., 2009). El principal mecanismo de aclimatación es el ajuste osmótico: la acumulación de solutos compatibles —prolina, glicina-betaína y azúcares solubles— que permite sostener la turgencia a potenciales hídricos más bajos (Blum, 2017; Ashraf & Foolad, 2007). En crisantemo de corte, además, los atributos de crecimiento y de calidad externa no responden en la misma proporción al déficit (Lin et al., 2011), por lo que la variable de decisión no es la supervivencia del cultivo sino la proporción de tallos que conserva grado exportable.
Los extractos de algas pardas constituyen una de las categorías de bioestimulantes con mayor respaldo experimental (du Jardin, 2015; Khan et al., 2009). En Ascophyllum nodosum el efecto descrito es de acondicionamiento previo: las plantas tratadas antes de la imposición del déficit regulan mejor la conductancia estomática, conservan el desempeño fotosintético y mantienen un mayor contenido relativo de agua que los testigos (Santaniello et al., 2017; Goñi et al., 2018; Shukla et al., 2019). Por esa razón el protocolo concentró las aplicaciones en las primeras cinco semanas del ciclo, antes y durante el inicio del forzamiento hídrico, y no como intervención correctiva posterior a la aparición de síntomas.
ALGAS AMIDCOO: composición y modo de acción propuesto
ALGAS AMIDCOO es un fertilizante orgánico-mineral líquido de aplicación foliar y fertirriego, con registro de venta ICA 14583, formulado y distribuido por Science Yields Solutions S.A.S. (Grupo SYS). Su composición garantizada declara 250 g/L de algas —mezcla de Laminaria sp., Ascophyllum nodosum y Sargassum sp.—, 72 g/L de aminoácidos libres totales, 56,9 g/L de carbono orgánico y 21,7 g/L de azufre.
La fracción aminoacídica incluye prolina e hidroxiprolina entre sus componentes mayoritarios. La prolina es uno de los osmolitos compatibles mejor caracterizados de la fisiología del estrés (Szabados & Savouré, 2010), y el aporte foliar de hidrolizados con alto contenido de aminoácidos libres se ha asociado a una mayor tolerancia al estrés abiótico en especies hortícolas (Colla et al., 2015). Esa doble composición es la que distingue a ALGAS AMIDCOO en el mercado. Buena parte de la oferta de bioestimulantes disponible en Colombia corresponde a hidrolizados de aminoácidos, que aportan materia prima metabólica, o a extractos de una sola especie de alga; ALGAS AMIDCOO es un bioestimulante que combina en un solo producto aminoácidos libres con una mezcla de tres algas pardas. La diferencia es de función: los aminoácidos aportan los sustratos del ajuste osmótico, y los compuestos bioactivos del extracto de algas modulan la respuesta hormonal de la planta frente al estrés (Wally et al., 2013). Bajo un déficit hídrico anunciado, se requieren ambas fracciones.
La hipótesis de trabajo fue que el aporte foliar preventivo de las dos fracciones refuerza el ajuste osmótico durante las etapas iniciales del déficit y amplía el margen de reducción de lámina que tolera el cultivo.
Diseño experimental y variables de respuesta
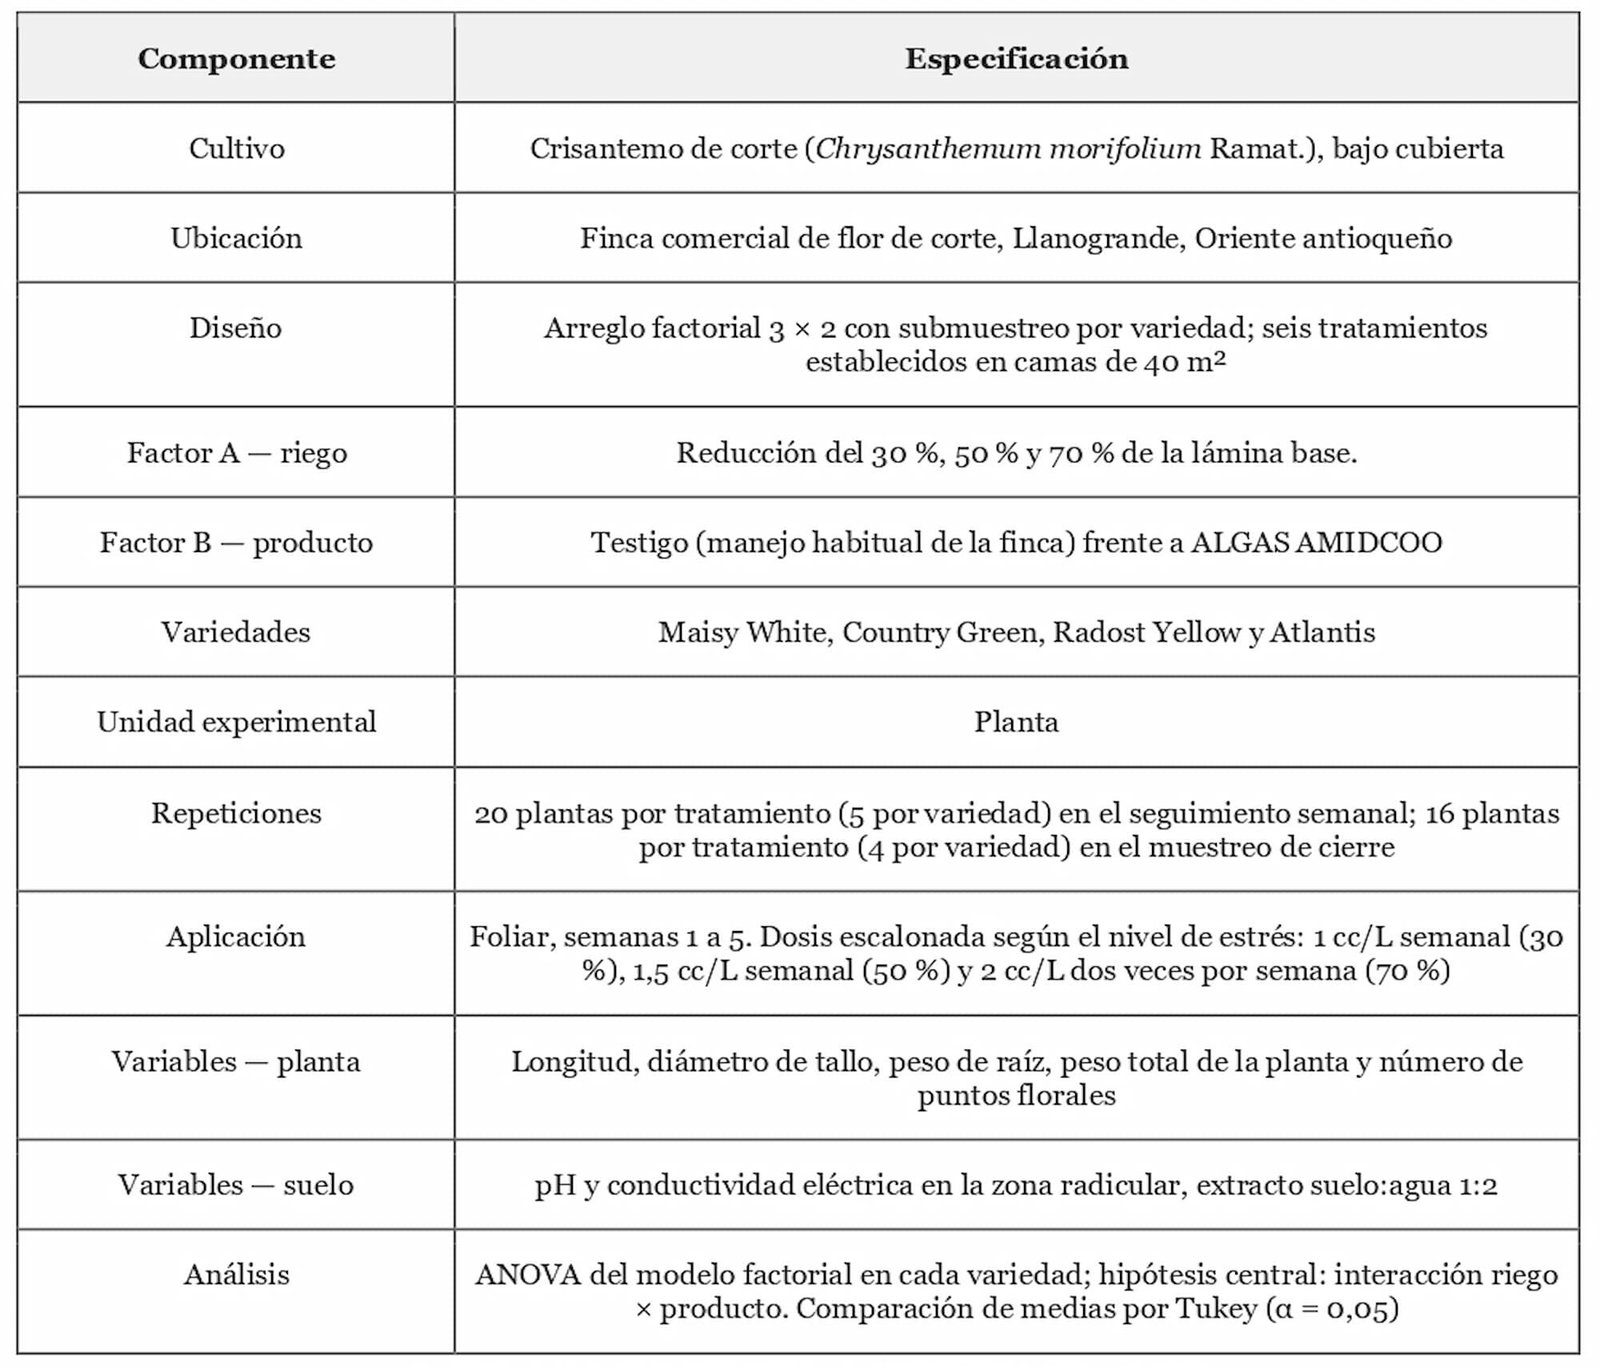
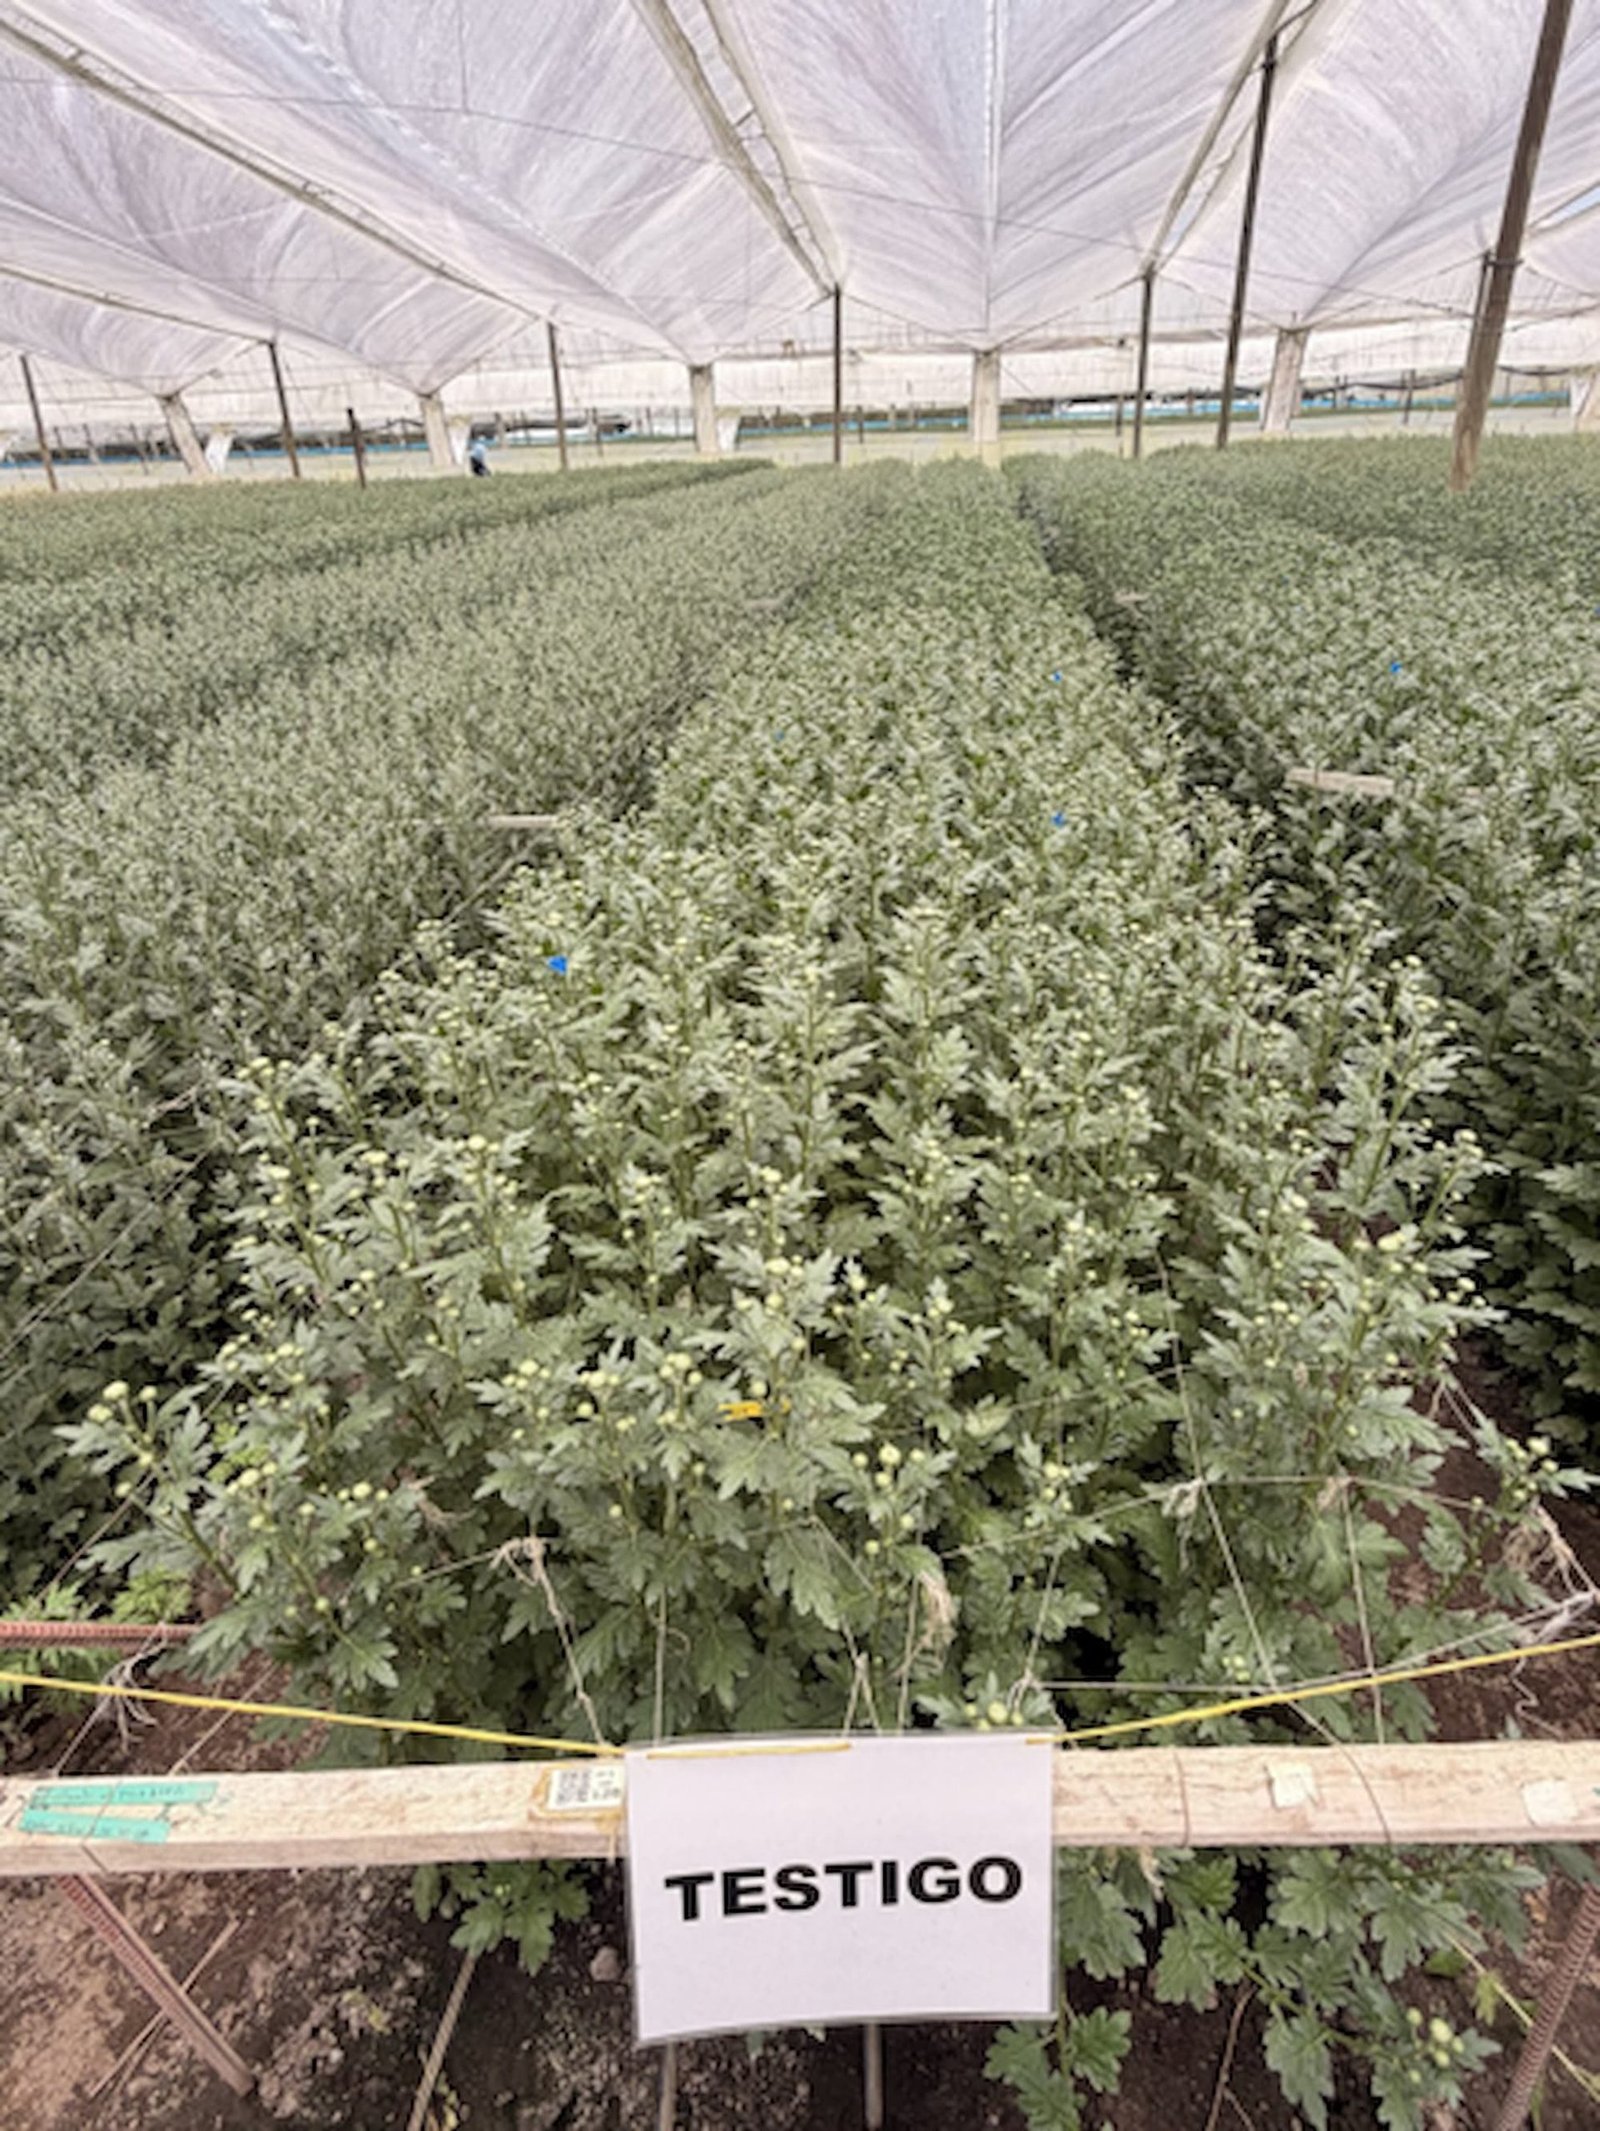
La evaluación se desarrolló entre agosto y octubre de 2026 en una finca comercial de crisantemo en el Oriente antioqueño, en condiciones productivas y bajo cubierta. Se combinaron tres niveles de reducción de la lámina de riego con dos manejos foliares —el manejo habitual de la finca como testigo y ALGAS AMIDCOO—, para un total de seis tratamientos, cada uno sembrado con cuatro variedades comerciales. La Tabla 1 resume el diseño y las variables registradas.
Resultados
Crecimiento durante el ciclo
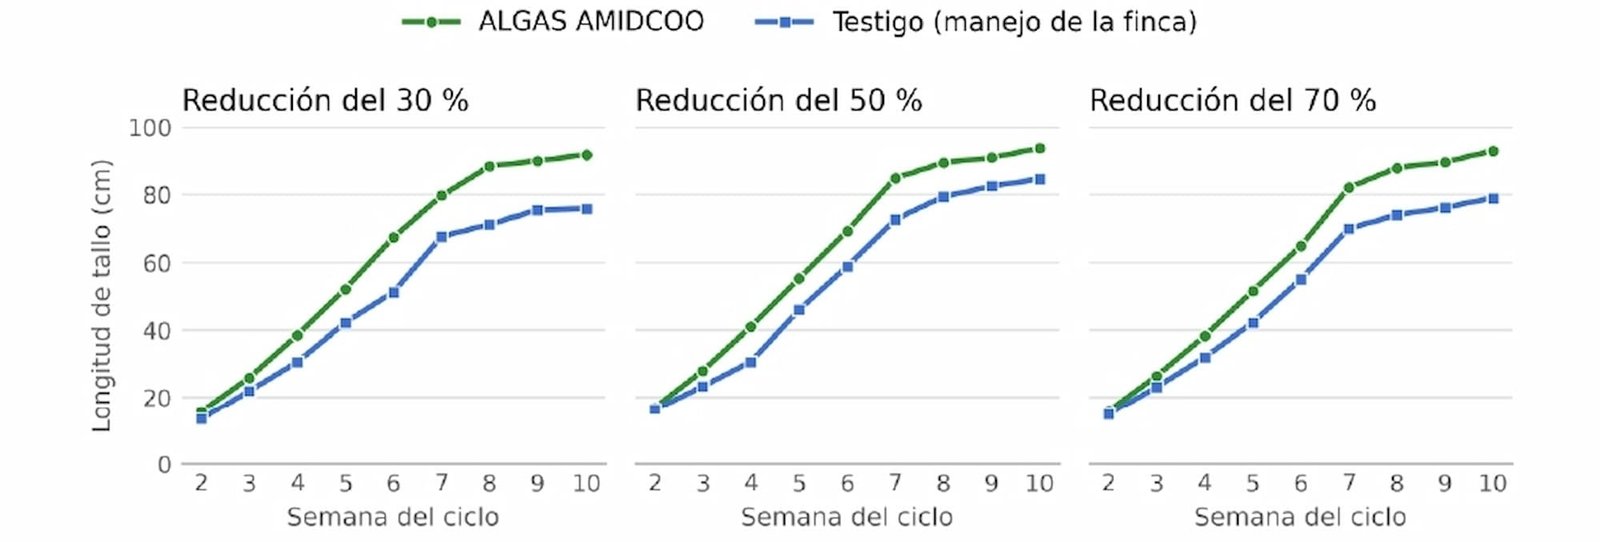
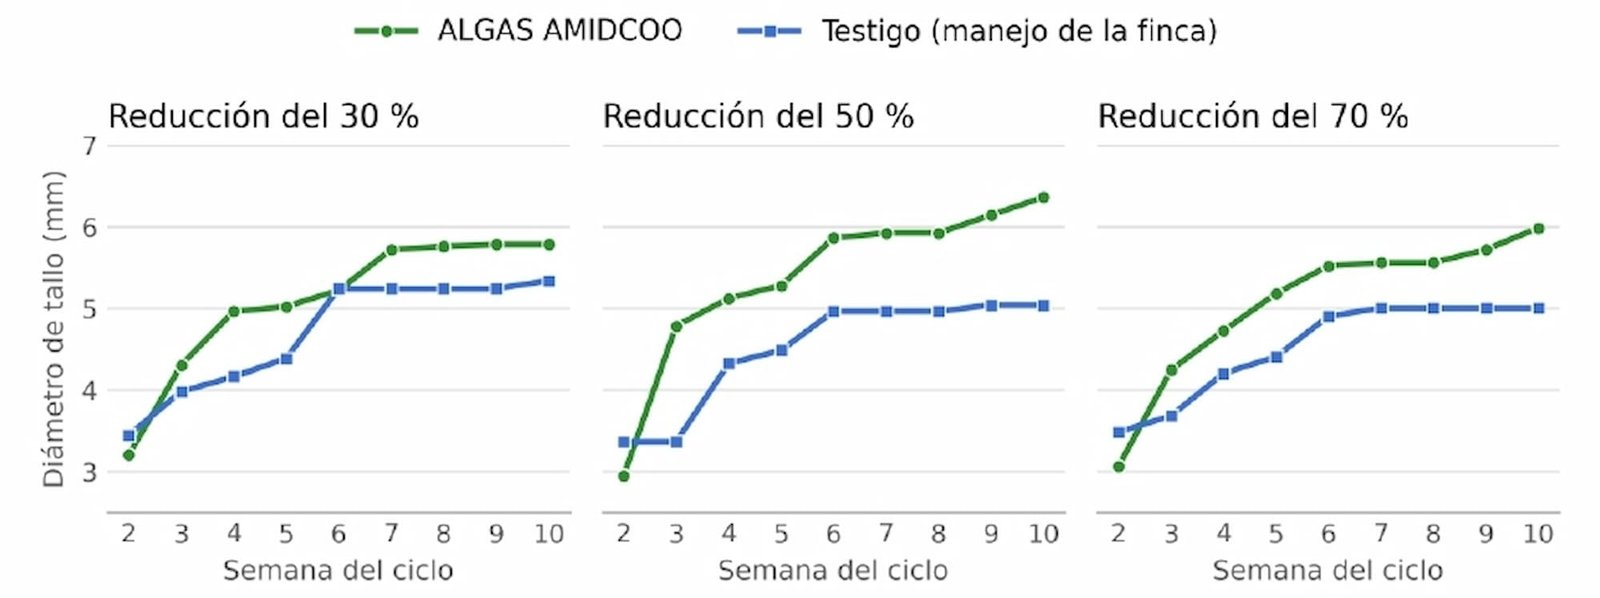
Las Figuras 1 y 2 muestran la evolución semanal de la longitud y el diámetro del tallo en Radost Yellow, la variedad en la que el efecto de ALGAS AMIDCOO fue más visible. En los tres niveles de riego, los tallos tratados fueron más largos que los del testigo en todas las lecturas y, en la décima semana, los superaban en 9 a 16 cm; desde la tercera semana fueron también más gruesos en casi todas las lecturas. Los resultados de las cuatro variedades al cierre del ciclo se presentan en la Tabla 2 y la Figura 3.
Calidad de la planta al cierre del ciclo
La Tabla 2 presenta los resultados al cierre del ciclo en cada variedad, y la Figura 3 los resume como diferencia porcentual frente al testigo de la misma variedad y el mismo nivel de riego. En la Tabla 2, dos valores que comparten al menos una letra no difieren estadísticamente.
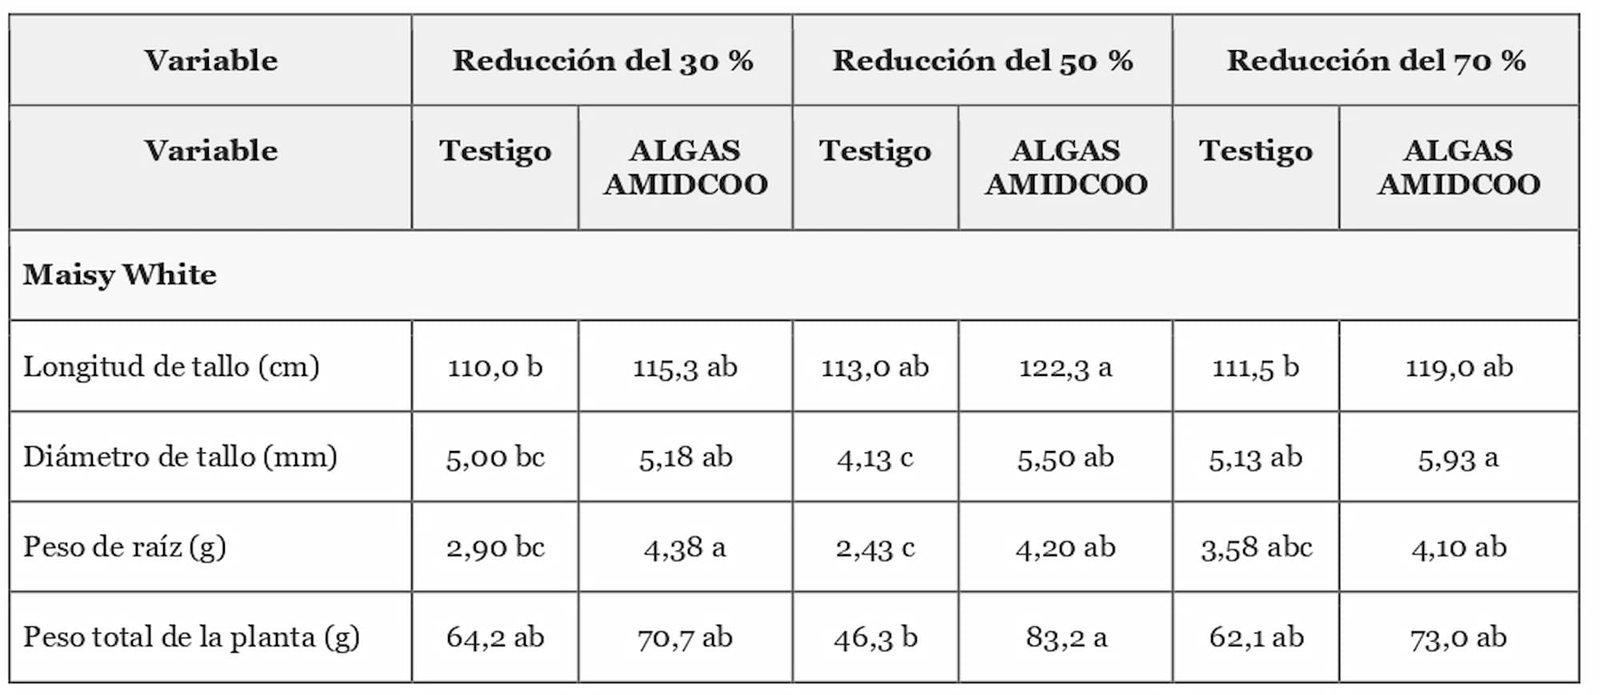
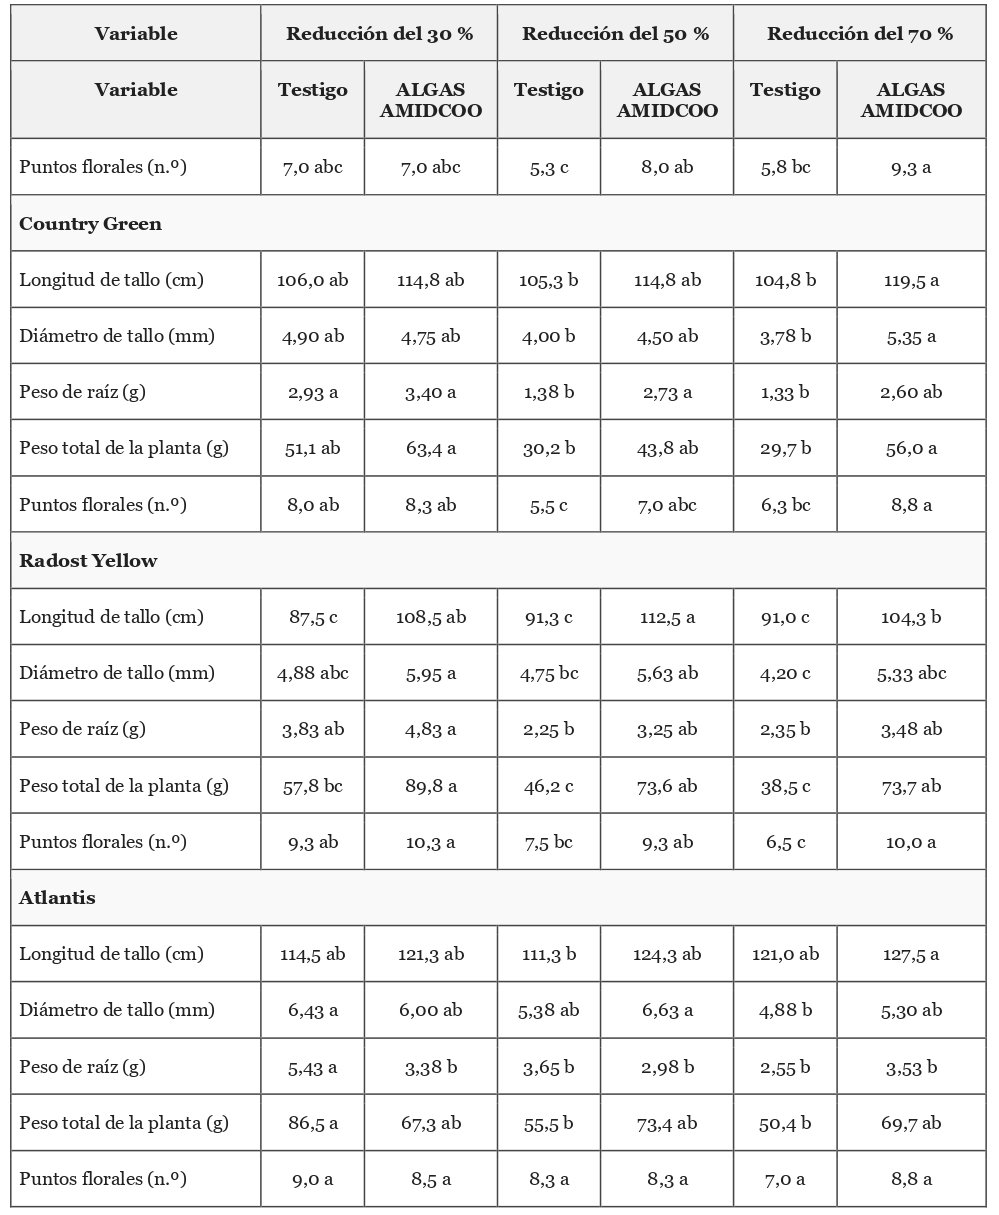
El resultado más claro se dio con la mayor reducción del riego. Con 70 % menos riego, las plantas tratadas con ALGAS AMIDCOO igualaron o superaron, en las cinco variables, al testigo que tuvo solo 30 % menos riego.
Al comparar los dos manejos con la misma reducción del riego, del 50 % o del 70 %, ALGAS AMIDCOO superó al testigo con diferencia significativa en tres variedades:
- Radost Yellow: más peso total y tallos más largos con 50 % y 70 %, y más puntos florales con 70 %.
- Maisy White: más peso total, más peso de raíz y tallos más gruesos con 50 %, y más puntos florales con 50 % y 70 %.
- Country Green: más peso total, más puntos florales y tallos más gruesos y más largos con 70 %, y más peso de raíz con 50 %.
La raíz también respondió: con 70 % de reducción, las plantas tratadas tuvieron más peso de raíz que el testigo en las cuatro variedades, aunque esa diferencia no fue significativa.
Con la reducción más leve, del 30 %, las diferencias significativas a favor de ALGAS AMIDCOO se dieron en Radost Yellow, en longitud y peso total, y en Maisy White, en peso de raíz. Atlantis fue la variedad con la respuesta menos marcada: con 30 % de reducción el testigo tuvo más peso de raíz, y con 50 % y 70 % las diferencias entre los dos manejos no fueron significativas.

Respuesta a la reducción del riego
Al reducir el riego, ALGAS AMIDCOO protegió el peso de la planta y la floración en las cuatro variedades. Con 50 % de reducción, el testigo perdió entre 20 % y 41 % del peso que tenía con 30 %; con ALGAS AMIDCOO la pérdida fue menor en todas las variedades y no la hubo en Maisy White ni en Atlantis. En Atlantis, las plantas tratadas mantuvieron el peso total y el de la raíz entre 30 % y 70 % de reducción, mientras el testigo perdió 42 % y 53 %. Con 70 % de reducción, el testigo perdió entre 18 % y 30 % de los puntos florales, y las plantas tratadas los mantuvieron o aumentaron.
Uniformidad del lote
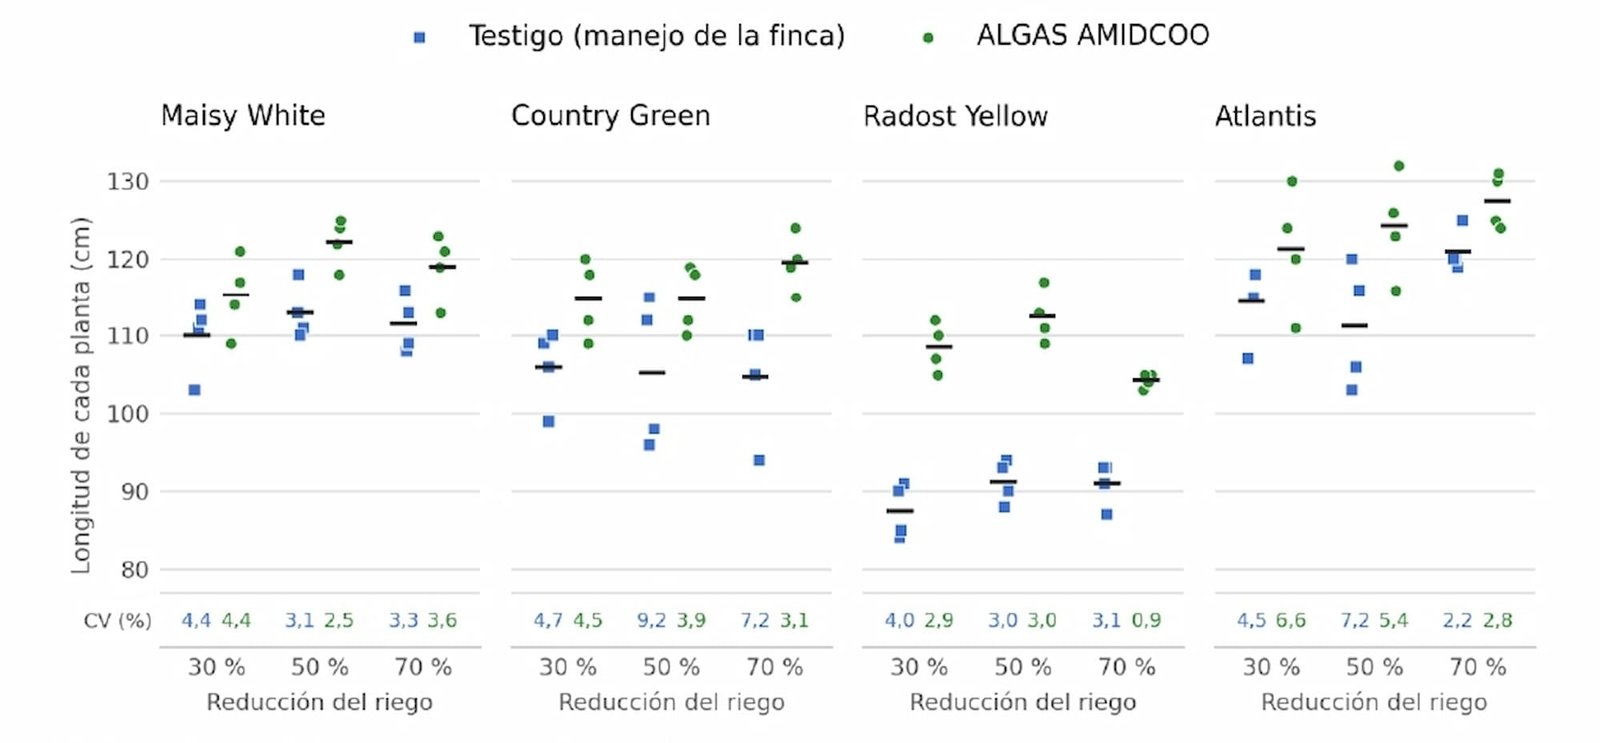
La Figura 4 muestra la longitud de cada planta al cierre del ciclo y el promedio de cada tratamiento. En las cuatro variedades y en los tres niveles de riego, el promedio de las plantas tratadas fue mayor que el del testigo, y en cada variedad la planta tratada más corta fue más larga que la planta más corta del testigo. En Radost Yellow, ninguna planta tratada midió menos de 103 cm, mientras que en el testigo ninguna llegó a 95 cm. Con ALGAS AMIDCOO el lote fue, además, más parejo en Country Green con 50 % y 70 % de reducción y en Radost Yellow con 70 %; en Maisy White la uniformidad fue similar en los dos manejos, y en Atlantis con 30 % el lote tratado fue menos parejo. Un lote más homogéneo concentra más tallos dentro del mismo grado de clasificación. Ver en la Figura 4 las agrupaciones de color azul (testigo) frente a las de color verde (ALGAS AMIDCOO).
Conductividad eléctrica y pH del suelo
En el nivel de 70 % de reducción, la zona radicular del testigo acumuló sales: la conductividad eléctrica del extracto 1:2 alcanzó 0,96 dS/m en la semana 3 y 1,23 dS/m en la semana 5, mientras que con ALGAS AMIDCOO se mantuvo entre 0,42 y 0,75 dS/m. En los niveles de 30 % y 50 % las diferencias fueron pequeñas, y el pH osciló entre 6,05 y 7,37 sin un patrón asociado al manejo.
Interpretación de los resultados
En síntesis. Un evento El Niño de intensidad muy fuerte convierte la disponibilidad de agua en una restricción cuantificable y desplaza el indicador de referencia desde el requerimiento del cultivo hacia la productividad del agua disponible. En esta evaluación, el crisantemo con el manejo habitual de la finca perdió peso, grosor de tallo y puntos florales a partir del 50 % de reducción de la lámina.
La aplicación foliar preventiva de ALGAS AMIDCOO durante las primeras cinco semanas del ciclo protegió el peso y la floración hasta el 70 % de reducción en las cuatro variedades evaluadas, y produjo tallos más largos en los tres niveles de riego. Para la floricultura de corte, el resultado indica que preparar la planta antes de que falte el agua amplía el margen de manejo del riego sin sacrificar los atributos que definen el grado exportable.
El umbral de reducción. En el manejo habitual de la finca, el paso de 30 % a 50 % de reducción afectó el peso de la planta, la raíz, el grosor del tallo y los puntos florales, mientras la longitud se mantuvo. Esta respuesta diferencial concuerda con Lin et al. (2011), quienes mostraron en crisantemo de corte que los atributos de crecimiento y de calidad no responden en la misma proporción al déficit hídrico. En la misma especie, Uçar y Kazaz (2016) encontraron que la cantidad y la frecuencia del riego afectaron el peso del tallo, el diámetro y el número de flores, y Kiehl et al. (1992) reportaron menor peso fresco y seco a medida que aumentaba la tensión de humedad del sustrato. Para el manejo en finca, la consecuencia es práctica: la longitud del tallo no basta para detectar el estrés; el peso de la planta y el número de puntos florales son los indicadores sensibles.
El efecto del producto bajo déficit. Los resultados respaldan la hipótesis de trabajo y coinciden con lo reportado para extractos de A. nodosum bajo riego reducido (Spann & Little, 2011; Goñi et al., 2018). Además de conservar el peso y los puntos florales, en Maisy White, Country Green y Atlantis las plantas tratadas sostuvieron mejor el diámetro del tallo. En Atlantis, la variedad de mayor importancia comercial, mantuvieron el peso total y el de la raíz entre 30 % y 70 % de reducción, mientras el testigo perdió 42 % y 53 % (interacción riego × producto, p = 0,007 y p = 0,003).
Raíz y grosor del tallo. Con 70 % de reducción, la raíz de las plantas tratadas pesó entre 15 % y 96 % más que la del testigo, según la variedad, y sus tallos fueron entre 9 % y 42 % más gruesos; la diferencia fue significativa en el diámetro de Country Green. Silva et al. (2010) encontraron en crisantemo que la aplicación foliar de extracto de A. nodosum aumentó la altura y el diámetro de los tallos y la masa seca de raíces, el mismo patrón observado en esta evaluación. Wally et al. (2013) mostraron que un extracto comercial de A. nodosum modifica la biosíntesis y la acumulación de citoquininas, auxinas y ácido abscísico en la planta, y las revisiones de Khan et al. (2009) y Ali et al. (2021) asocian esos cambios a una mayor división y expansión celular.
Sales en la zona radicular. La reducción de la lámina disminuye la fracción de lavado y favorece la acumulación de sales en la zona radicular (Ayers & Westcot, 1985; Machado & Serralheiro, 2017). La menor conductividad observada con ALGAS AMIDCOO en el nivel de 70 % es consistente con los reportes de mejor adaptación al estrés salino de plantas tratadas con extractos de A. nodosum (Di Stasio et al., 2018), y será una de las variables por seguir en los próximos ciclos.
Preparar desde ahora el ciclo de San Valentín
Las siembras destinadas a San Valentín se harán y crecerán en los meses en que se espera la mayor intensidad de El Niño. Esta evaluación muestra cuándo actuar: al inicio del ciclo. ALGAS AMIDCOO se aplicó de forma preventiva durante las primeras cinco semanas, antes de que el déficit afectara a la planta. Con ese esquema, las plantas de las cuatro variedades evaluadas conservaron mejor que el testigo el peso y los puntos florales con hasta 70 % de reducción del riego. El efecto descrito para estos extractos es de acondicionamiento previo (Shukla et al., 2019). Por eso la aplicación debe hacerse antes de que aparezcan los síntomas de estrés, no después.
Invitamos a los productores de crisantemo a incluir ALGAS AMIDCOO en el programa de sus siembras para San Valentín. Las aplicaciones van desde la primera semana después de la siembra y durante las cinco primeras semanas del ciclo. La dosis se ajusta a la restricción de riego prevista en cada finca, según el esquema evaluado (Tabla 1) y la recomendación del representante técnico de Grupo SYS.
Referencias
Ali, O., Ramsubhag, A., & Jayaraman, J. (2021). Biostimulant properties of seaweed extracts in plants: Implications towards sustainable crop production. Plants, 10(3), 531. https://doi.org/10.3390/plants10030531
Ashraf, M., & Foolad, M. R. (2007). Roles of glycine betaine and proline in improving plant abiotic stress resistance. Environmental and Experimental Botany, 59(2), 206–216. https://doi.org/10.1016/j.envexpbot.2005.12.006
Ayers, R. S., & Westcot, D. W. (1985). Water quality for agriculture (FAO Irrigation and Drainage Paper 29, Rev. 1). Organización de las Naciones Unidas para la Alimentación y la Agricultura. https://www.fao.org/3/t0234e/T0234E00.htm
Blum, A. (2017). Osmotic adjustment is a prime drought stress adaptive engine in support of plant production. Plant, Cell & Environment, 40(1), 4–10. https://doi.org/10.1111/pce.12800
Chaves, M. M., Maroco, J. P., & Pereira, J. S. (2003). Understanding plant responses to drought: From genes to the whole plant. Functional Plant Biology, 30(3), 239–264. https://doi.org/10.1071/FP02076
Colla, G., Nardi, S., Cardarelli, M., Ertani, A., Lucini, L., Canaguier, R., & Rouphael, Y. (2015). Protein hydrolysates as biostimulants in horticulture. Scientia Horticulturae, 196, 28–38. https://doi.org/10.1016/j.scienta.2015.08.037
Di Stasio, E., Van Oosten, M. J., Silletti, S., Raimondi, G., dell’Aversana, E., Carillo, P., & Maggio, A. (2018). Ascophyllum nodosum-based algal extracts act as enhancers of growth, fruit quality, and adaptation to stress in salinized tomato plants. Journal of Applied Phycology, 30, 2675–2686. https://doi.org/10.1007/s10811-018-1439-9
du Jardin, P. (2015). Plant biostimulants: Definition, concept, main categories and regulation. Scientia Horticulturae, 196, 3–14. https://doi.org/10.1016/j.scienta.2015.09.021
Farooq, M., Wahid, A., Kobayashi, N., Fujita, D., & Basra, S. M. A. (2009). Plant drought stress: Effects, mechanisms and management. Agronomy for Sustainable Development, 29(1), 185–212. https://doi.org/10.1051/agro:2008021
Goñi, O., Quille, P., & O’Connell, S. (2018). Ascophyllum nodosum extract biostimulants and their role in enhancing tolerance to drought stress in tomato plants. Plant Physiology and Biochemistry, 126, 63–73. https://doi.org/10.1016/j.plaphy.2018.02.024
Instituto de Hidrología, Meteorología y Estudios Ambientales [Ideam]. (2026, 10 de septiembre). El Niño se fortalece: aumenta a 75 % la probabilidad de que sea el más fuerte de la historia. https://www.ideam.gov.co/sala-de-prensa/noticia/el-nino-se-fortalece-aumenta-75-la-probabilidad-de-que-sea-el-mas-fuerte-de-la-historia
Khan, W., Rayirath, U. P., Subramanian, S., Jithesh, M. N., Rayorath, P., Hodges, D. M., Critchley, A. T., Craigie, J. S., Norrie, J., & Prithiviraj, B. (2009). Seaweed extracts as biostimulants of plant growth and development. Journal of Plant Growth Regulation, 28(4), 386–399. https://doi.org/10.1007/s00344-009-9103-x
Kiehl, P. A., Lieth, J. H., & Burger, D. W. (1992). Growth response of chrysanthemum to various container medium moisture tension levels. Journal of the American Society for Horticultural Science, 117(2), 224–229.
Lin, L., Li, W., Shao, J., Luo, W., Dai, J., Yin, X., Zhou, Y., & Zhao, C. (2011). Modelling the effects of soil water potential on growth and quality of cut chrysanthemum (Chrysanthemum morifolium). Scientia Horticulturae, 130(1), 275–288. https://doi.org/10.1016/j.scienta.2011.06.008
López, M. I., & Cardona, L. J. (2026). Preparar la planta antes de que falte el agua. Revista Metroflor Agro, 135, 48–52.
Machado, R. M. A., & Serralheiro, R. P. (2017). Soil salinity: Effect on vegetable crop growth. Management practices to prevent and mitigate soil salinization. Horticulturae, 3(2), 30. https://doi.org/10.3390/horticulturae3020030
Santaniello, A., Scartazza, A., Gresta, F., Loreti, E., Biasone, A., Di Tommaso, D., Piaggesi, A., & Perata, P. (2017). Ascophyllum nodosum seaweed extract alleviates drought stress in Arabidopsis by affecting photosynthetic performance and related gene expression. Frontiers in Plant Science, 8, 1362. https://doi.org/10.3389/fpls.2017.01362
Shukla, P. S., Mantin, E. G., Adil, M., Bajpai, S., Critchley, A. T., & Prithiviraj, B. (2019). Ascophyllum nodosum-based biostimulants: Sustainable applications in agriculture for the stimulation of plant growth, stress tolerance, and disease management. Frontiers in Plant Science, 10, 655. https://doi.org/10.3389/fpls.2019.00655
Silva, C. P., Laschi, D., Ono, E. O., Rodrigues, J. D., & Mogor, Á. F. (2010). Aplicação foliar do extrato de alga Ascophyllum nodosum e do ácido glutâmico no desenvolvimento inicial de crisântemos (Dendranthema morifolium (Ramat.) Kitam.) em vasos. Revista Brasileira de Horticultura Ornamental, 16(2), 179–181.
Spann, T. M., & Little, H. A. (2011). Applications of a commercial extract of the brown seaweed Ascophyllum nodosum increases drought tolerance in container-grown ‘Hamlin’ sweet orange nursery trees. HortScience, 46(4), 577–582. https://doi.org/10.21273/HORTSCI.46.4.577
Szabados, L., & Savouré, A. (2010). Proline: A multifunctional amino acid. Trends in Plant Science, 15(2), 89–97. https://doi.org/10.1016/j.tplants.2009.11.009
Uçar, Y., & Kazaz, S. (2016). Farklı sulama programlarının krizantemin kalitesi üzerine etkileri [Effects of different irrigation schedulings on quality of cut chrysanthemum]. Tarım Bilimleri Dergisi – Journal of Agricultural Sciences, 22(3), 385–397.
Wally, O. S. D., Critchley, A. T., Hiltz, D., Craigie, J. S., Han, X., Zaharia, L. I., Abrams, S. R., & Prithiviraj, B. (2013). Regulation of phytohormone biosynthesis and accumulation in Arabidopsis following treatment with commercial extract from the marine macroalga Ascophyllum nodosum. Journal of Plant Growth Regulation, 32(2), 324–339. https://doi.org/10.1007/s00344-012-9301-9